Dossier publié le 29 octobre 2026 à partir d’une étude parue le 26 octobre. Le visuel de couverture est une figure expérimentale de l’article original, réutilisée sous CC BY 4.0; les schémas vectoriels sont des constructions pédagogiques, pas de nouvelles données.
1. Comment un biais microscopique traverse les échelles
Une spirale collective peut surgir d’une asymétrie presque invisible dans le mouvement de chaque cellule. Le résultat remarquable n’est pas simplement qu’un groupe tourne : c’est qu’une préférence directionnelle faible, combinée à l’alignement entre voisines et à une alimentation continue en cellules, organise des fronts qui progressent vers l’extérieur tout en pivotant. À l’échelle de l’agrégat, le motif atteint plusieurs centimètres alors que son ingrédient directionnel commence à l’échelle cellulaire. [1]
2. L’organisme et le protocole expérimental
Les auteurs travaillent avec Dictyostelium discoideum, une amibe sociale dont des cellules isolées se rassemblent lorsque la nourriture s’épuise. Pour isoler le transport collectif de la chimiotaxie ordinaire, ils utilisent des mutants KI déficients en chimiotaxie. Des cellules affamées sont déposées dans un creux circulaire de 2 mm de rayon, sur une gélose non nutritive. Le dépôt constitue une source localisée qui continue d’alimenter le front en cellules. Ce montage contraint la géométrie initiale; il ne représente ni un organisme intact ni un tissu animal. [1]
Le choix des cellules KI répond à une question précise : une population peut-elle acquérir un sens collectif de rotation même lorsque l’attraction chimique habituelle ne guide pas son rassemblement? La mutation élimine une explication importante, mais ne rend pas les cellules passives. Elles se déplacent, adhèrent, se heurtent et peuvent s’aligner. L’expérience cherche donc comment ces interactions actives, combinées à une asymétrie de migration, organisent un front. Elle ne prétend pas que toute chimiotaxie est absente de toute biologie de Dictyostelium.
Le dispositif est un système ouvert : les cellules quittent progressivement le dépôt et alimentent l’espace autour de lui. Un modèle fermé conserverait son nombre de cellules; il ne pourrait pas tester de la même façon le rôle du flux entrant dans la formation et le maintien du motif. Cette distinction est pertinente pour comparer des systèmes alimentés en matière, mais la comparaison avec un tissu en développement demeure une piste conceptuelle. Le protocole sur gélose n’est pas un embryon miniature. [1]
3. Une chronologie mesurée, pas une spirale instantanée
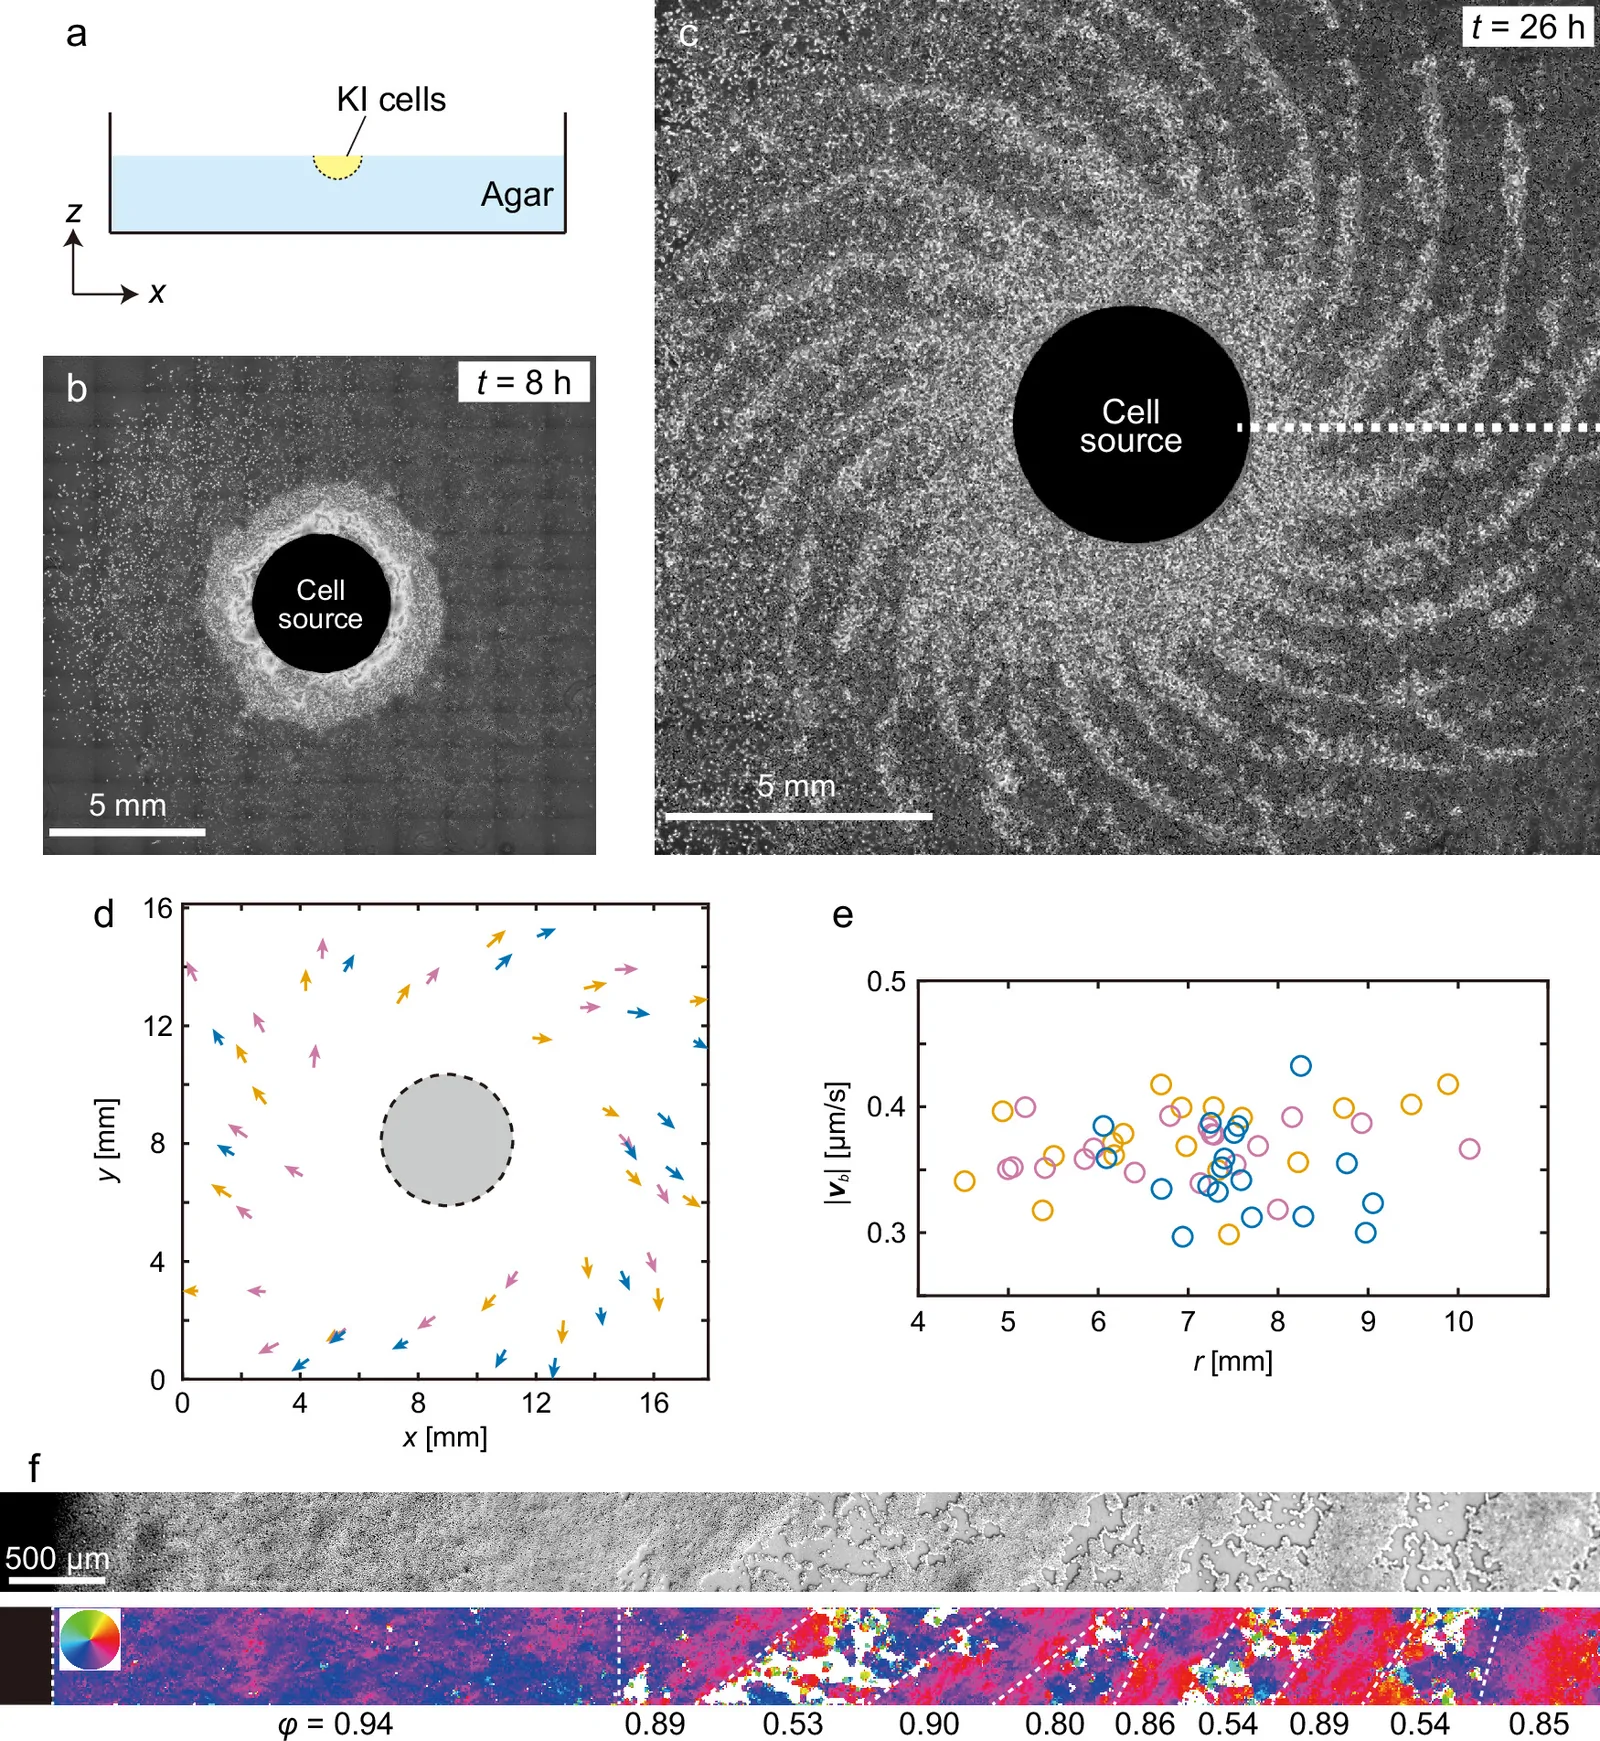
Le premier anneau dense apparaît après environ huit heures. À 26 heures, le front est devenu une structure à plusieurs bras qui tourne dans le sens horaire. Les auteurs rapportent trois répétitions indépendantes. Ces temps appartiennent à ce protocole précis : ils ne sont pas des constantes universelles de Dictyostelium. La figure 1 de l’article montre le montage, l’anneau puis le motif observé; les figures originales portent leur crédit et leur licence. [1]
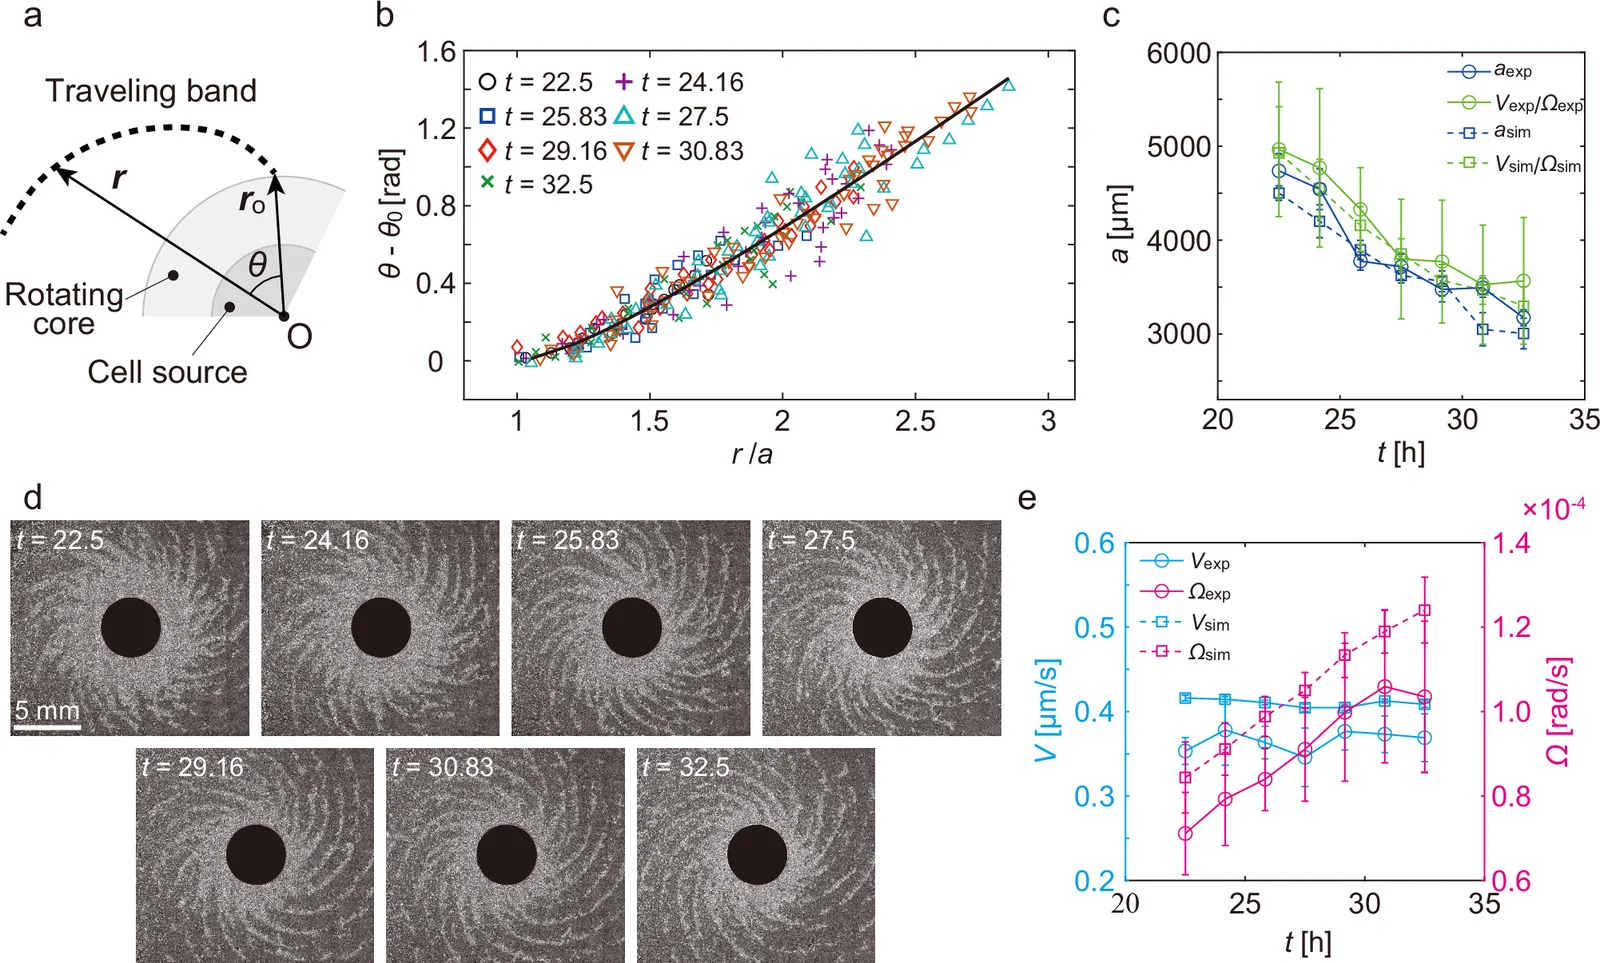
La géométrie des bras offre un deuxième niveau d’analyse. Les auteurs ajustent le front par une involute de cercle et comparent les mesures aux paramètres de vitesse. Ce n’est pas simplement une spirale dessinée sur une photo : les positions le long du front, leur angle et leur évolution temporelle sont mesurés. La figure 2 rassemble cet ajustement, l’évolution des bras et les vitesses expérimentales. [1]
La figure expérimentale ne montre pas uniquement une silhouette. Les auteurs mesurent le déplacement des bandes perpendiculairement à leur propre front, puis comparent cette vitesse à la distance au centre. Ce choix sépare la propagation radiale de la rotation : une bande peut avancer vers l’extérieur tout en étant entraînée latéralement par le cœur. La vitesse normale reste presque uniforme sur les positions mesurées, avec une moyenne rapportée de 0,363 μm/s. Ce résultat justifie l’approximation de vitesse V utilisée dans la loi géométrique; il ne signifie pas que chaque cellule suit exactement cette vitesse. [1]
La figure 2 permet de vérifier que la forme ne repose pas sur une simple ressemblance. Les auteurs tracent l’angle du bras en fonction de sa distance au centre, puis testent l’involute après mise à l’échelle par a. Ils comparent deux estimations de a : l’ajustement géométrique du bras et le rapport indépendant V/Ω. Ces estimations évoluent ensemble. En parallèle, les images accélérées montrent que V varie peu tandis que Ω augmente; les bras deviennent alors plus tangents au cœur. Les mesures sont présentées comme des moyennes avec dispersion, et les effectifs varient selon le temps et la grandeur mesurée. Le résultat est une cohérence entre géométrie et cinématique, pas une loi universelle déduite d’une photographie. [1]
4. Les trois ingrédients : biais, alignement, apport
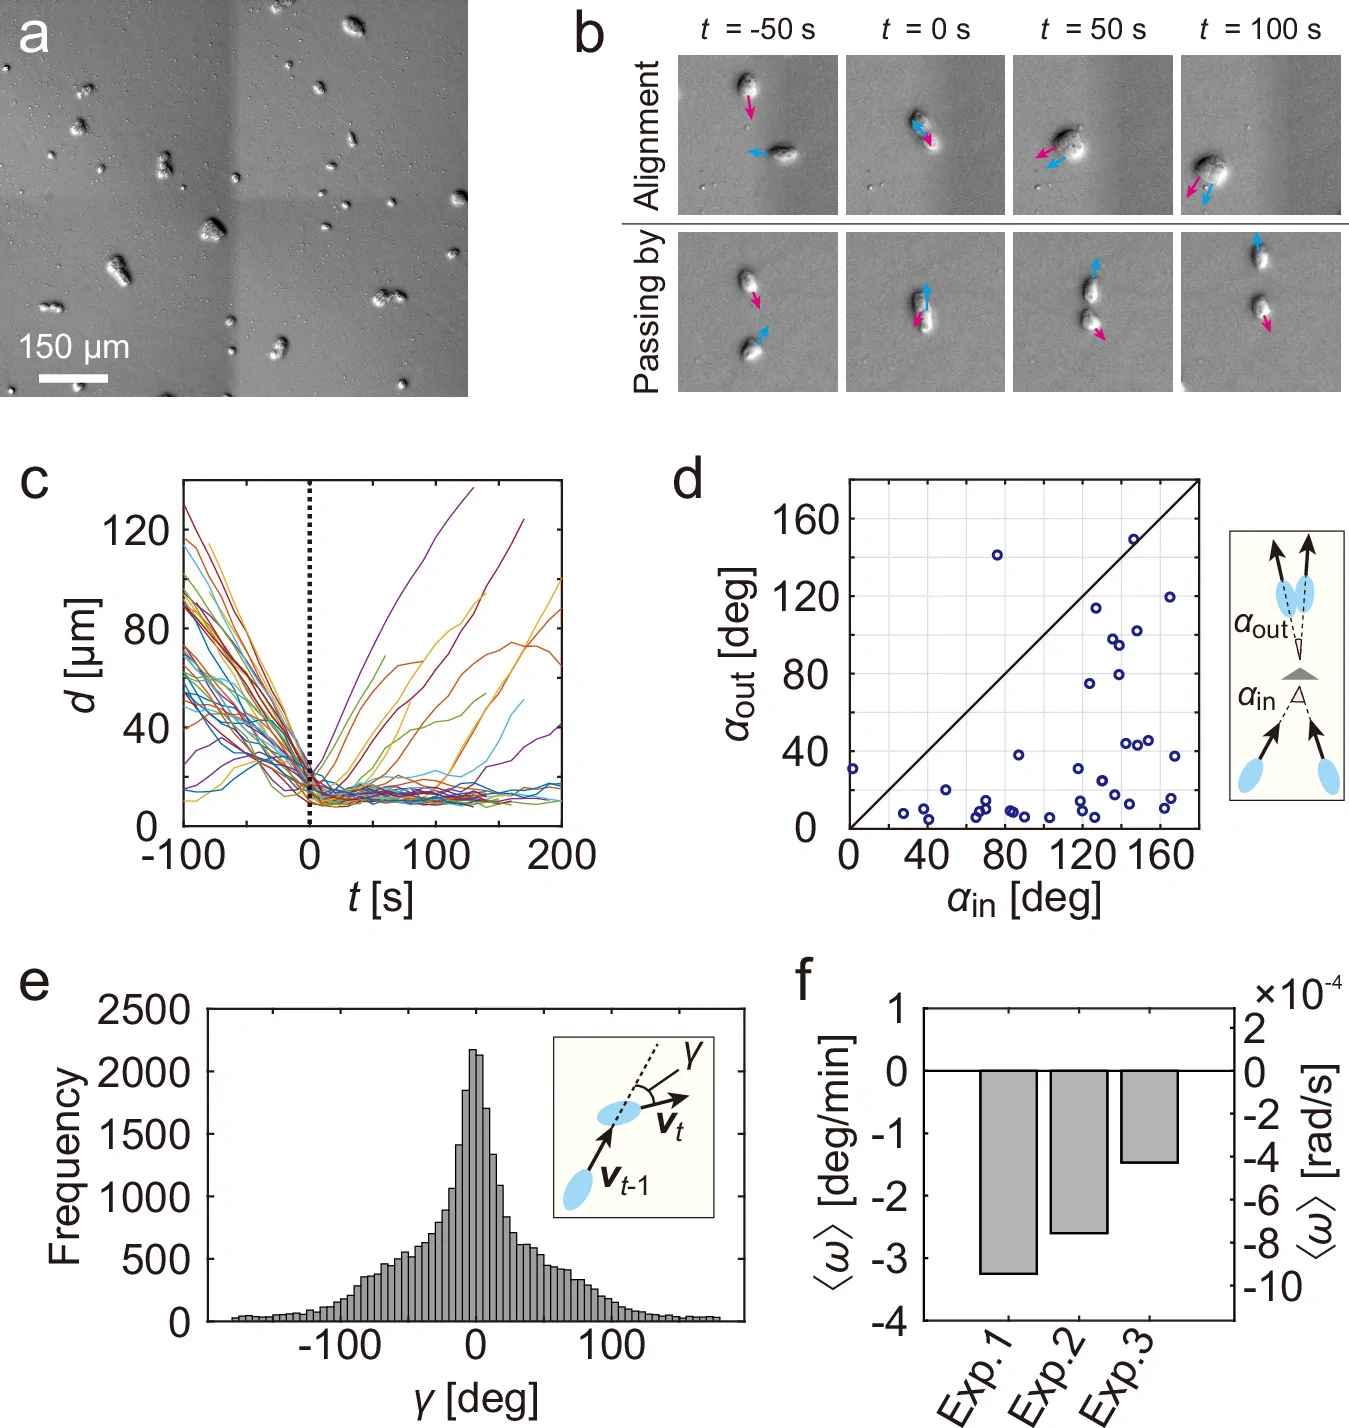
Le modèle minimal identifie trois ingrédients essentiels : une chiralité intrinsèque, un alignement polaire de courte portée et un apport continu depuis une source localisée. Les expériences apportent des éléments distincts en faveur de chacun : biais horaire à l’échelle des cellules, alignement après collision, et dispositif ouvert où le nombre de cellules augmente. L’alignement amplifie une préférence trop faible pour imposer seule un motif macroscopique; l’apport soutient le front mobile. Ce mécanisme est une amplification collective, pas la rotation coordonnée d’un organisme central. [1]
La figure 3 relie plusieurs échelles de preuve. Les collisions de cellules réduisent souvent l’angle entre leurs directions de migration; 37 collisions ont été suivies dans deux expériences. À une échelle plus longue, les centroïdes de cellules seules et de petits amas sont suivis toutes les 30 secondes. Les trajectoires tournent dans les deux sens, mais la vitesse angulaire moyenne demeure négative dans chacune des trois expériences : −3,23, −2,81 et −1,60 degrés par minute, avec des intervalles de confiance à 95 % entièrement sous zéro. Les milliers de points de trajectoire ne remplacent pas les répétitions biologiques indépendantes; ils estiment un faible signal à l’intérieur d’un petit nombre d’expériences. Cette distinction rend l’argument plus solide qu’une flèche horaire dessinée sur un schéma. [1]
La vitesse moyenne de propagation rapportée est V = 0,363 μm/s. La forme du front tournant est ajustée par une involute de cercle, dans laquelle l’échelle géométrique a est liée à la vitesse V et à la vitesse angulaire Ω. Comme V reste approximativement stable alors que Ω augmente, les bras deviennent plus tangents au cours du temps. Cette relation décrit l’ajustement des fronts observés; elle n’affirme pas que toute spirale biologique obéit à la même loi. [1]
5. Lire la forme comme une mesure de vitesse
La courbe involute relie le déplacement d’un front au mouvement de son point d’attache. Une bande est créée près du bord du cœur qui tourne, puis progresse vers l’extérieur à vitesse presque constante pendant que son origine pivote à la vitesse angulaire Ω. Le paramètre a = V/Ω a donc les dimensions d’une longueur. Il fixe l’échelle du profil : à vitesse V donnée, une rotation plus rapide resserre la relation géométrique entre distance radiale et angle. Ce lien est plus informatif qu’une ressemblance visuelle avec une spirale dessinée. [1]
Dans cette expression, r mesure la distance au centre et θ la direction du front; le terme Ωt fait tourner le motif dans le temps. L’ajustement est fait sur des points suivis le long de bandes réelles, et non choisi pour qu’une courbe paraisse bien par-dessus la micrographie. À mesure que le cœur se contracte, Ω augmente alors que V varie peu; a diminue et les bras s’inclinent davantage vers la tangente du cercle. Cette lecture géométrique permet de comparer des instants et de confronter l’expérience aux simulations. [1]
Cette distinction évite une confusion fréquente entre trois familles de courbes. Dans une spirale d’Archimède, l’écart radial entre deux tours est constant; dans une spirale logarithmique, le rayon est multiplié du même facteur à chaque tour et l’angle entre rayon et tangente reste constant. L’involute observée ici décrit plutôt le fil déroulé d’un cercle : sa loi relie l’angle au trajet radial d’un front émis par un point d’attache qui tourne. Elle ressemble à une spirale, mais sa loi géométrique traduit une cinématique précise — propagation à vitesse V et rotation à vitesse Ω. La qualification correcte dépend donc de la mesure de la courbe et du mécanisme, pas de son apparence générale. [1]
6. De la cellule au motif : où se fait l’amplification?
La faiblesse du biais individuel est précisément ce qui rend l’échelle collective intéressante. Une cellule isolée ne suit pas une orbite stable autour de la source. Dans une population désordonnée, les petites rotations dans les deux sens se compensent largement. Les rencontres réduisent localement les écarts d’orientation; le flux continu renouvelle les cellules au front; autour de la source, l’ordre polaire transforme alors une préférence moyenne minuscule en circulation cohérente. Il s’agit d’un mécanisme statistique : l’alignement filtre le bruit sans supprimer la variabilité de chaque trajectoire. [1]
Les auteurs estiment qu’un biais de quelques degrés par minute combiné à une vitesse cellulaire moyenne d’environ 0,52 μm/s correspond à un rayon de rotation de l’ordre du millimètre. L’ordre de grandeur rejoint celui du cœur observé autour de la source. Ce rapprochement relie deux mesures à des échelles très différentes; il n’est pas une prédiction sans incertitude d’un rayon exact. La taille du cœur dépend aussi du débit de cellules, de la géométrie du creux et de la durée de l’expérience. [1]
Le test le plus révélateur de cette chaîne causale vient de bandes détachées du cœur : elles se propagent, mais ne commencent pas spontanément à tourner et à se refermer en spirale. Lorsque les chercheurs diminuent la quantité de suspension chargée à la source, des bandes peuvent encore apparaître sans acquérir la même organisation horaire. Le front seul ne suffit donc pas; le cœur entretenu par le flux est la pièce qui transforme des ondes mobiles en motif chiral. [1]
Le paramètre φ résume l’accord des directions locales : on normalise chaque vecteur vitesse, on en fait la moyenne, puis on prend la longueur de ce vecteur moyen. Si les directions s’annulent dans tous les sens, φ est près de zéro; si elles pointent presque ensemble, il approche un. Il ne mesure ni la vitesse des cellules, ni la proportion de cellules vivantes, ni à lui seul le sens horaire. C’est pourquoi les auteurs le lisent avec la direction des vecteurs et la position dans le motif. Le cœur atteint 0,94; les bandes restent entre 0,85 et 0,90, alors que plusieurs interstices tombent près de 0,53. L’ordre est donc spatialement structuré, non uniforme. [1]
7. Le test qui empêche une explication trop facile
Le contrôle le plus instructif concerne le cœur de l’agrégat. Lorsque l’organisation du cœur est supprimée, des bandes peuvent encore se former, mais elles ne prennent pas la même rotation horaire organisée. Inversement, les bandes libres observées ne se transforment pas spontanément en spirale. Il faut donc distinguer production d’ondes, chiralité collective et architecture en spirale : ces phénomènes sont liés dans le résultat, mais ne sont pas interchangeables. [1]
8. Le modèle révèle trois régimes, pas une spirale inévitable
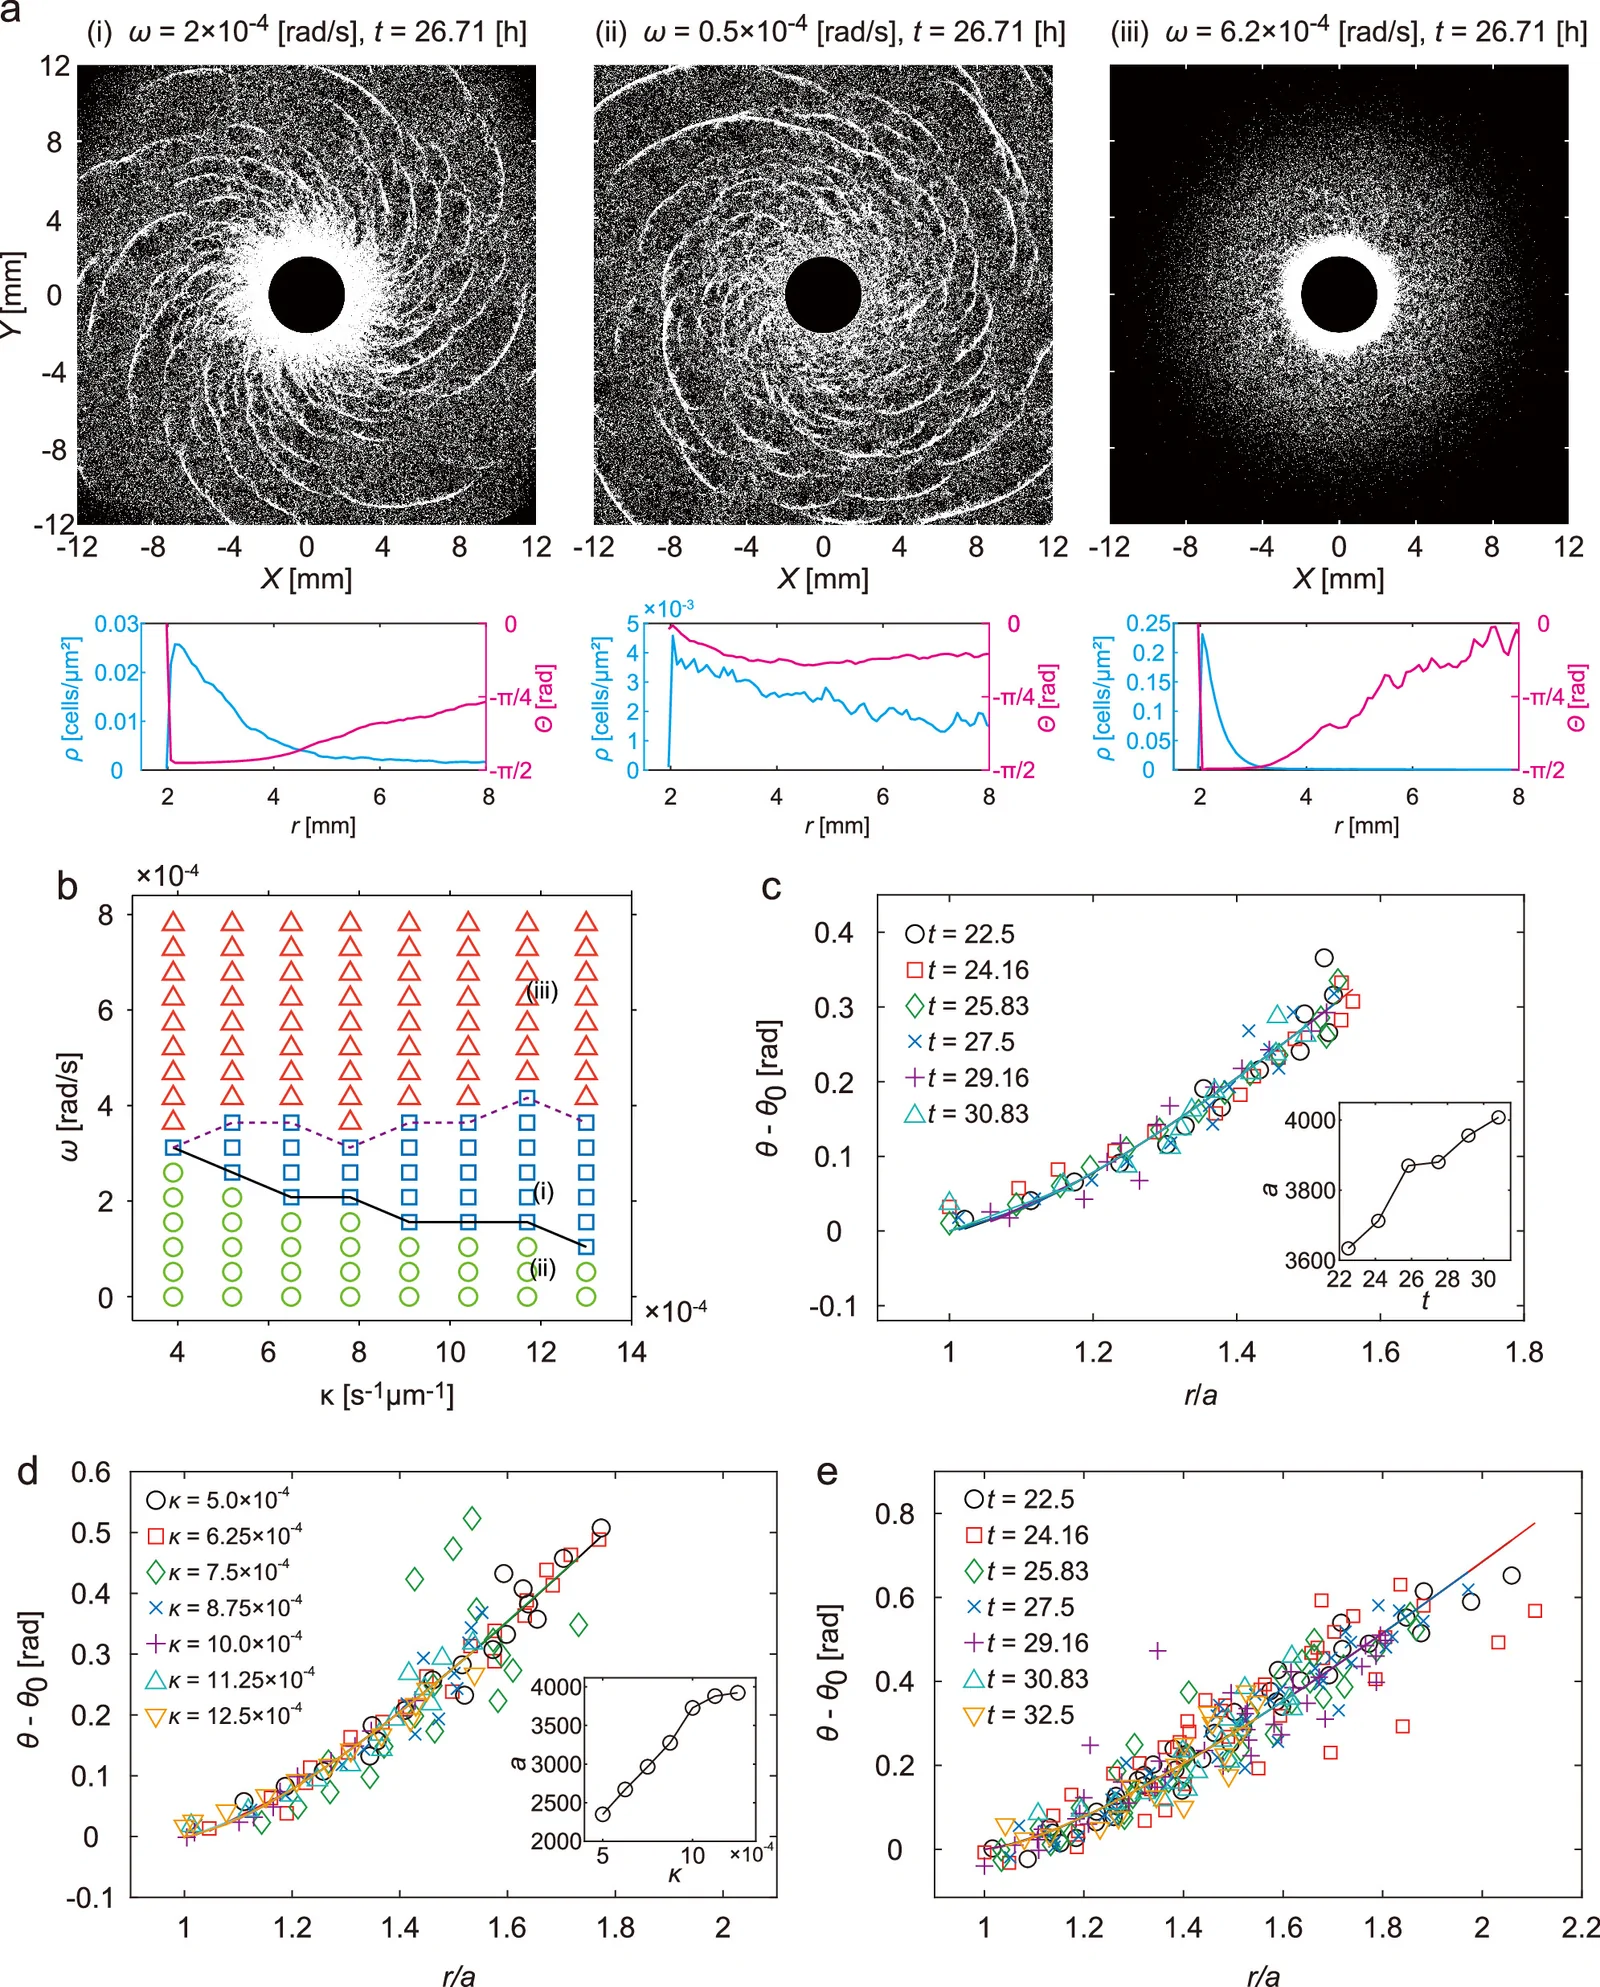
Le modèle de Vicsek est volontairement minimal : chaque agent garde une vitesse fixée, tend à suivre la direction moyenne de ses voisines, subit du bruit et reçoit une rotation intrinsèque. La source réinjecte régulièrement de nouveaux agents en périphérie. Le modèle peut ainsi isoler les ingrédients nécessaires sans prétendre reproduire la forme d’une amibe ou toutes ses interactions moléculaires. Un diagramme de phase fait ensuite varier la force du biais chiral et le taux de renouvellement pour repérer les régimes concentrique, spiralé et compact. [1]
Cette écriture rend visibles les choix du modèle. La position avance à vitesse constante v₀ dans la direction θᵢ; l’orientation tourne sous l’effet d’un biais intrinsèque ω, d’un alignement local d’intensité K et d’un bruit rotationnel Dᵣ. Les nouvelles cellules sont ajoutées au bord de la source circulaire, au lieu de conserver un nombre fixe de particules. Dans la simulation, l’interaction agit dans une portée d’environ une taille cellulaire. Ce n’est pas un modèle moléculaire : il teste si ces règles collectives suffisent à faire apparaître les régimes observés. [1]
Pour classer ces régimes, les auteurs ne s’en remettent pas à une simple inspection visuelle. Ils calculent un paramètre de circulation pour l’orientation rotative et un paramètre chiral spatial pour la structure multi-bras. Cette étape compte : une tache dense peut tourner sans former plusieurs bras, et une bande peut exister sans rotation organisée. Deux indicateurs permettent de distinguer circulation, chiralité du motif et densité. Le « domaine spiralé » du diagramme est donc une propriété définie par les observables retenues dans ce modèle. [1]
Le rapprochement quantitatif reste imparfait. La chiralité mesurée dans l’expérience ne correspond pas exactement à la plage où le modèle produit ses spirales; les auteurs évoquent notamment l’absence d’exclusion de volume, qui peut faire s’accumuler trop de cellules au cœur. L’évolution du débit cellulaire à la source paraît expliquer la diminution du paramètre géométrique a avec le temps, mais le débit n’a pas pu être mesuré directement près de la zone très dense. C’est une limite explicite du modèle et de l’imagerie. [1]
Le diagramme de phase de la figure 4 pose une question plus forte qu’un ajustement : dans quelles conditions le système change-t-il de régime? Les auteurs font varier la chiralité ω et le taux d’apport κ, avec un bruit fixé près de la transition entre ordre et désordre. Une chiralité faible produit des ondes concentriques; une plage intermédiaire permet un cœur tournant et plusieurs bras; une chiralité forte laisse surtout un noyau compact, sans bras étendus. Les domaines sont classés avec des paramètres d’ordre, donc selon des critères déclarés plutôt qu’un jugement visuel seul. La spirale est une fenêtre de fonctionnement parmi plusieurs réponses possibles du système. [1]
Les auteurs confrontent le même motif à trois familles de modèles indépendantes. Leur accord qualitatif rend moins probable une spirale qui serait un artefact d’une seule formulation mathématique. Il ne rend pas tous les détails quantitatifs interchangeables : les interactions y sont représentées de façons différentes et certains paramètres ont été choisis pour être proches de la transition entre ordre et désordre. La convergence des modèles soutient une classe de mécanismes; elle n’identifie pas encore une description microscopique unique de chaque collision cellulaire. [1]
La comparaison entre expérience et simulation dépend aussi d’un choix d’échelle. Les auteurs associent une longueur de simulation à environ 20 μm, soit le diamètre cellulaire, et un pas de temps à environ 19,23 s en utilisant une vitesse typique de 0,52 μm/s. Avec cette conversion, une rotation modélisée de 0,004 rad par pas correspond à environ 0,715 degré par minute, du même ordre que le biais mesuré. C’est une calibration d’ordre de grandeur destinée à comparer les dynamiques; elle ne transforme pas chaque paramètre sans dimension en constante biologique directement mesurée. [1]
9. Ce que ce résultat établit — et ce qu’il ne prouve pas
L’étude établit un scénario expérimental et théorique où une faible chiralité cellulaire, une polarisation locale et une source renouvelée suffisent à organiser des ondes tournantes de grande échelle chez un organisme unicellulaire social. Elle rend plausible l’idée que la chiralité collective peut contribuer à des motifs de développement. Elle ne démontre pas que ce mécanisme explique l’asymétrie gauche-droite des vertébrés, ni que des cellules d’un embryon suivent ce protocole. Le passage entre organismes et échelles reste une question à tester. [1] [2]
Le rapprochement avec la morphogenèse naît du fait que certains tissus sont eux aussi ouverts et alimentés par des sources localisées de cellules. Les auteurs évoquent notamment la migration de cellules de crête neurale comme contexte possible. Ce parallèle formule une question de recherche, pas une correspondance déjà observée : il faudrait mesurer chiralité, interactions d’alignement et flux dans un tissu réel, puis montrer que les trois contribuent causalement à une asymétrie macroscopique. La spirale de Dictyostelium établit une possibilité physique en laboratoire, pas une explication universelle du développement. [1]
Le contexte historique aide à cerner la nouveauté. Une étude antérieure des mêmes cellules KI décrivait des bandes migratrices presque périodiques, sans mettre en évidence de chiralité nette. Le résultat présent ne transforme donc pas simplement une onde en jolie spirale : il ajoute un cœur polarisé qui tourne, entretenu par une source de cellules et capable de maintenir les bandes attachées à son bord. Les bandes détachées avancent sans rotation perceptible; quand le cœur est affaibli en réduisant la quantité de cellules déposées, les bandes subsistent mais perdent leur organisation horaire. Cette comparaison expérimentale contraint le mécanisme plus fortement qu’une analogie visuelle seule. [1]
10. Les expériences qui départageraient les mécanismes
Un test décisif mesurerait d’abord, séparément, le biais des cellules isolées, l’alignement entre voisines et le débit alimentant le front, puis ferait varier ces facteurs un à un. Si le biais est inversé sans modifier la source, le sens de rotation du cœur devrait s’inverser; si le renouvellement est interrompu, les bras devraient finir par se détacher ou perdre leur cohérence. Mesurer simultanément le débit et le rayon du cœur testerait le lien proposé entre alimentation, Ω et inclinaison des bras. Répéter ces essais sur davantage d’échantillons, avec distributions et incertitudes, distinguerait une corrélation d’une chaîne causale robuste. Ce sont des propositions, pas des résultats déjà obtenus. [1]
Références
- [1]Masayuki Hayakawa, Biplab Bhattacherjee, Hidekazu Kuwayama et Tatsuo Shibata. (2026). Emergence of chiral multi-armed spirals in an open system of migrating cells under continuous cell supply. Nature Communications, 17, p. 10535. DOI: 10.1038/s41467-026-78179-4. https://pmc.ncbi.nlm.nih.gov/articles/PMC13710842/ — Étude expérimentale et théorique primaire; article en libre accès sous CC BY 4.0.
- [2]RIKEN. (2026). 多細胞集団によるキラリティの増幅 — 細胞の「利き手」がつくるセンチメートル級のスパイラル. RIKEN press release. https://www.riken.jp/press/2026/20261026_1/index.html — Résumé institutionnel japonais de l’équipe de recherche.