1. Introduction
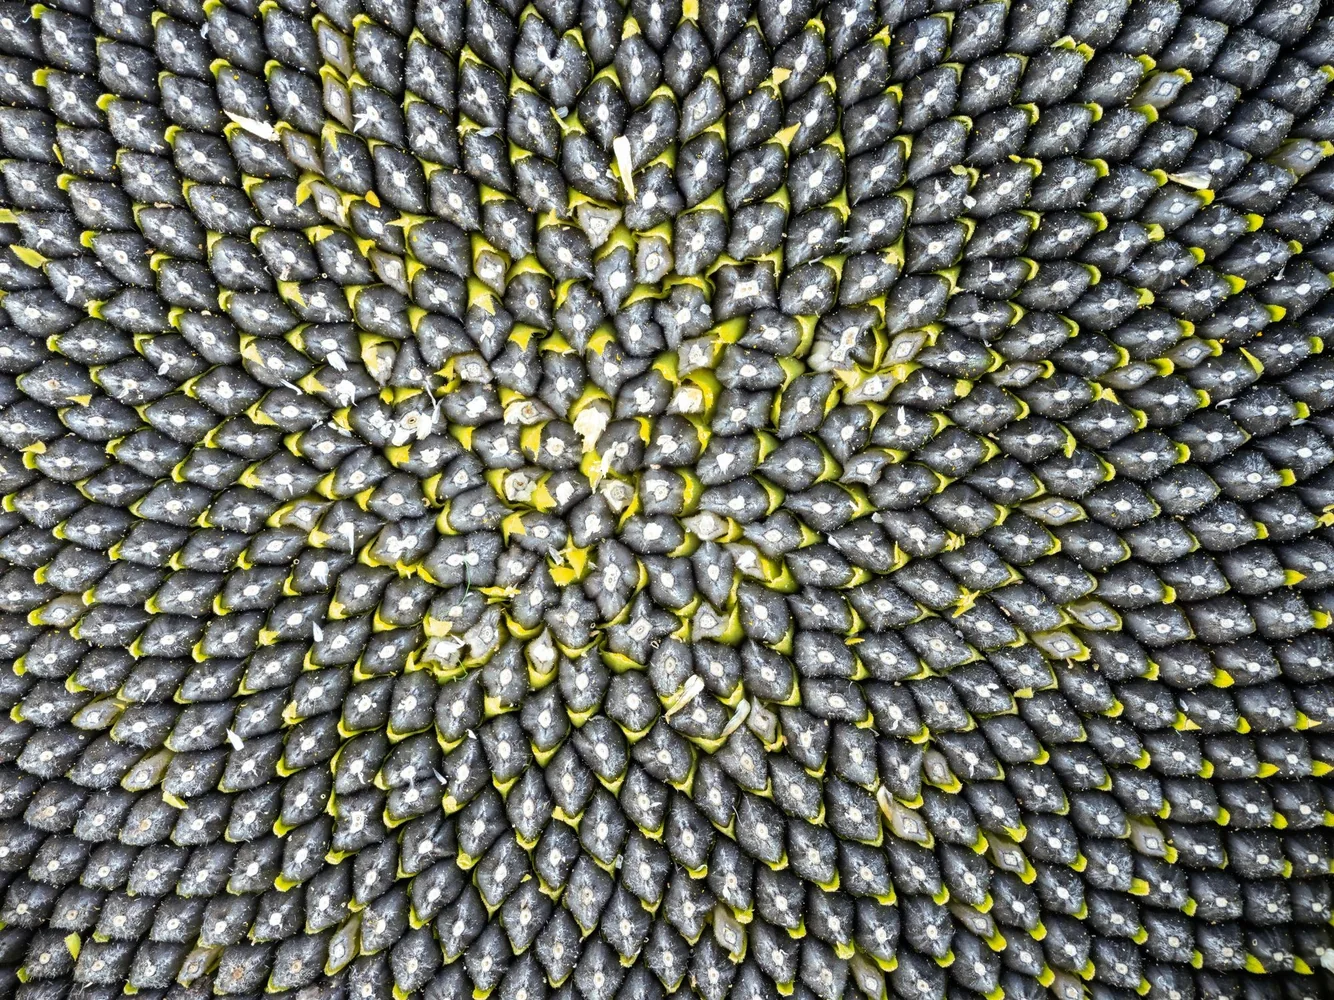
Un tournesol compte typiquement 34 spirales dans un sens et 55 dans l'autre — deux nombres consécutifs de Fibonacci. Une pomme de pin en compte 8 et 13. Ce n'est pas un hasard ni un plan cosmique : c'est la conséquence mécanique de la façon dont les plantes produisent leurs organes.
2. Le méristème apical
Le méristème apical est une zone de cellules indifférenciées au sommet de la tige. C'est là que se forment les primordia — les ébauches des futures feuilles, pétales ou graines. Chaque nouveau primordium apparaît dans l'espace le plus disponible, le plus éloigné des primordia déjà en place.
Ce principe d'inhibition spatiale — chaque organe repousse les suivants — est suffisant pour générer des motifs spiralés sans qu'aucun plan global ne soit nécessaire. La spirale émerge de règles purement locales.
3. L'angle d'or
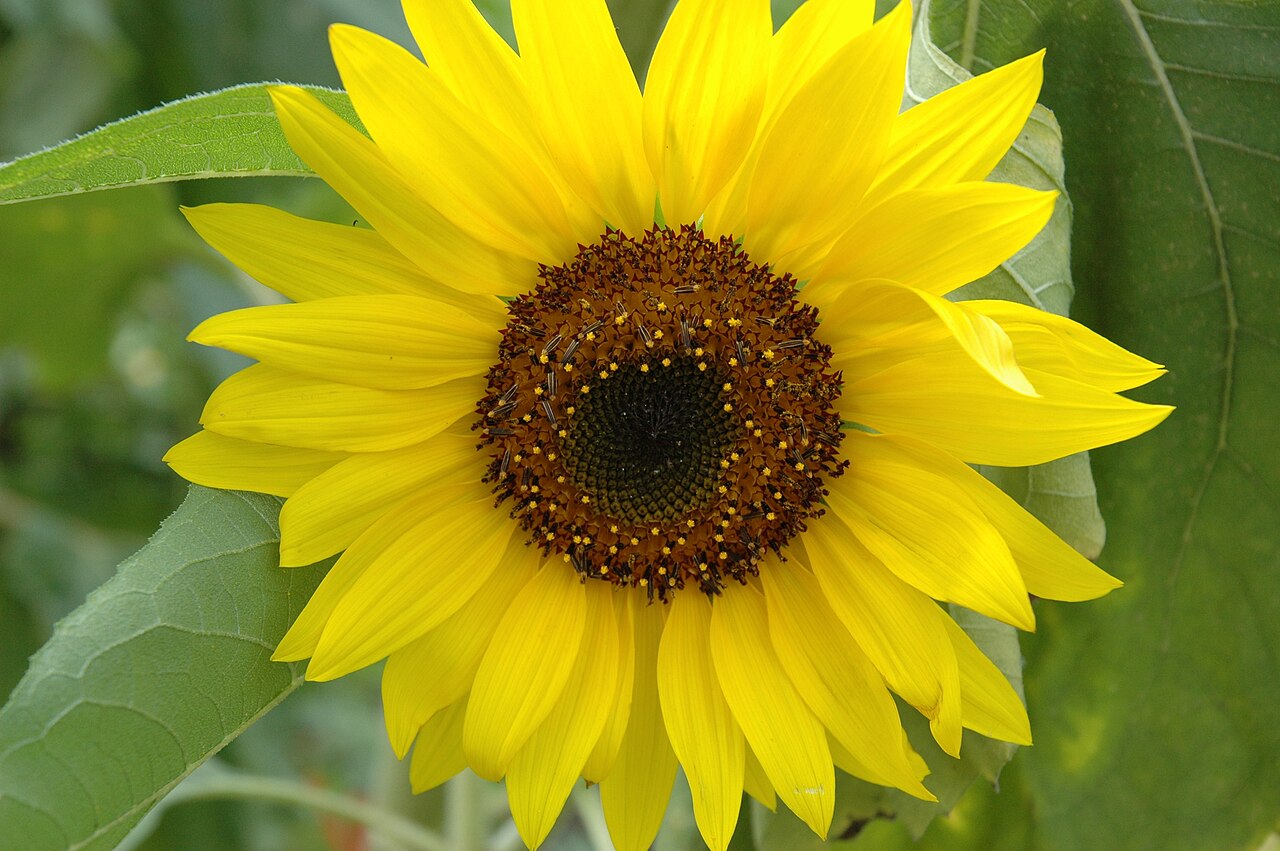
L'angle d'or vaut environ 137,508°. C'est l'angle qui divise un cercle dans le rapport du nombre d'or φ ≈ 1,618. Si chaque nouveau primordium apparaît à 137,508° du précédent, aucune direction radiale n'est jamais surpeuplée : la distribution est maximalement uniforme.
Cet angle est irrationnel de la manière la plus profonde : il est le moins bien approximable par des fractions rationnelles simples. C'est précisément ce qui garantit l'absence de directions privilégiées.
4. Fibonacci et phyllotaxie
Quand on trace les spirales visibles dans un tournesol, on obtient deux familles de spirales qui s'enroulent en sens opposés. Leurs nombres sont toujours deux termes consécutifs de la suite de Fibonacci : (1,1), (1,2), (2,3), (3,5), (5,8), (8,13), (13,21), (21,34), (34,55), (55,89)...
Ce lien avec Fibonacci découle directement de l'angle d'or : les meilleures approximations rationnelles de φ sont les rapports de Fibonacci successifs. Les spirales visibles correspondent aux directions où les primordia s'alignent le mieux.
5. Modèles mécaniques
Plusieurs modèles physiques reproduisent la phyllotaxie. Le modèle de Douady et Couder (1992) utilise des gouttes magnétiques déposées sur un disque tournant : elles se repoussent et s'organisent spontanément selon l'angle d'or. Le modèle de Mitchison (1977) utilise des gradients d'auxine — une hormone végétale — pour simuler l'inhibition entre primordia.
6. Lire les parastichies sans confondre cause et apparence
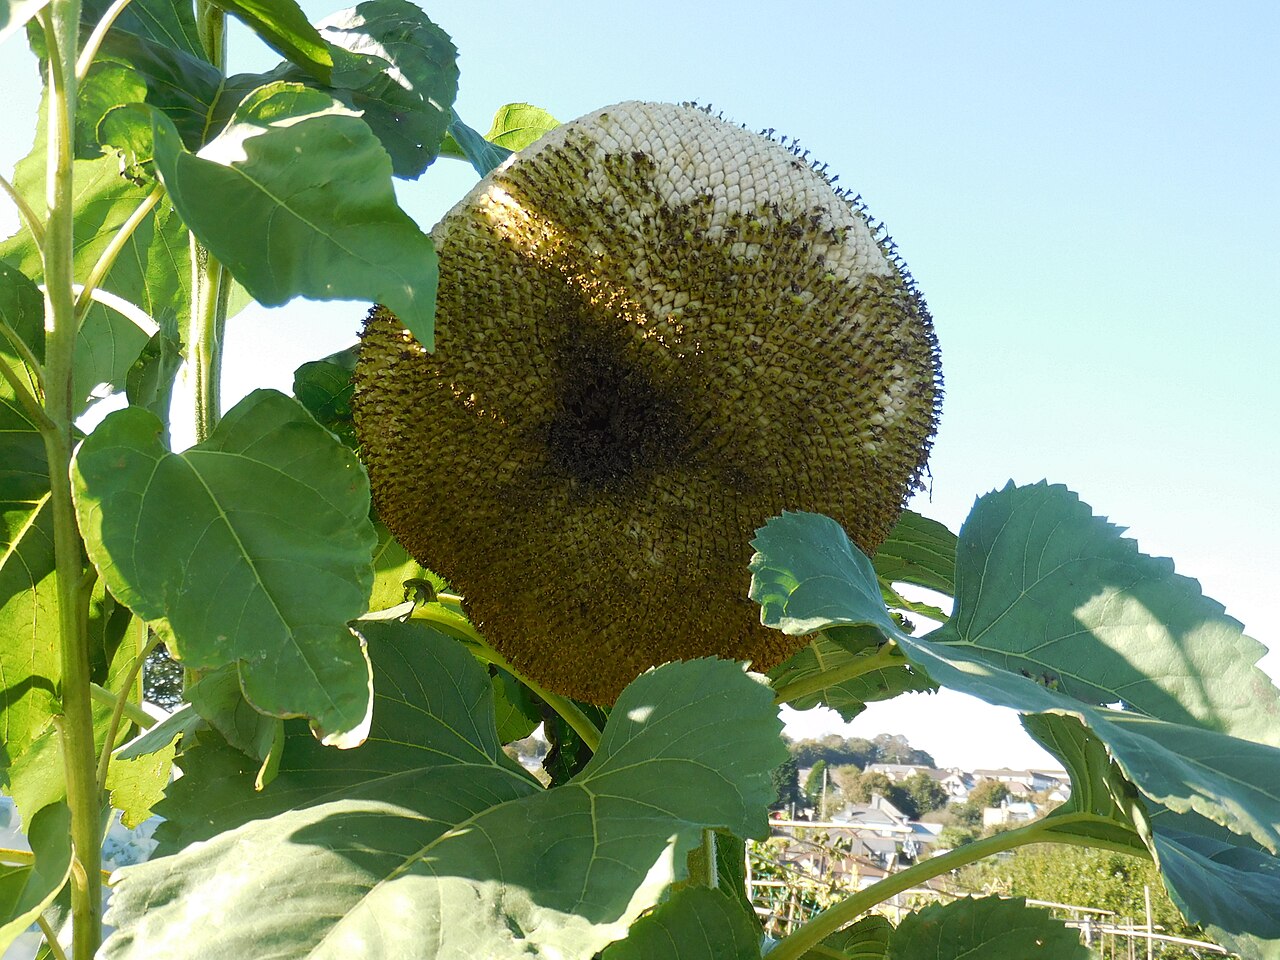
Les lignes courbes que l’œil suit sur une pomme de pin ou un capitule sont des parastichies. Elles relient des organes voisins dans le motif final, mais la plante ne trace pas d’abord ces spirales pour ensuite y déposer ses organes. L’ordre génératif est une suite temporelle de primordia; les familles de spirales deviennent visibles après coup, lorsque plusieurs voisins géométriques sont comparés. Le nombre de parastichies dépend donc du stade observé, de la définition du voisinage et de la manière dont la surface a grandi.
Cette distinction explique pourquoi deux photographies du même type de plante peuvent faire ressortir des couples différents, par exemple 34/55 ou 55/89. Ces entiers décrivent une organisation locale robuste, non une signature numérique immuable de l’espèce. Compter exige une image suffisamment complète, un centre bien identifié et une convention explicite sur les lignes interrompues ou bifurquées.
7. Auxine, transport polarisé et création d’un nouveau primordium
Au méristème, l’auxine n’agit pas comme une simple peinture indiquant un emplacement prédéfini. Des transporteurs membranaires, notamment PIN1, orientent les flux entre cellules. Des maxima locaux d’auxine apparaissent dans la couche externe; lorsqu’un maximum dépasse les conditions nécessaires à l’initiation, un nouveau primordium se forme. Les expériences où le transport polarisé est perturbé modifient ou arrêtent l’initiation, tandis qu’une application locale d’auxine peut déclencher un organe. [1]
Un primordium déjà formé redistribue ensuite le champ de transport et réduit la probabilité qu’un second apparaisse trop près. Le motif résulte ainsi d’une boucle: transport, accumulation, initiation, puis modification du transport. Les modèles cellulaires montrent qu’une telle boucle peut produire une phyllotaxie stable et aussi des transitions entre arrangements opposés, décussés et spiralés, sans horloge centrale qui dicterait chaque angle. [2]
8. L’angle d’or est un attracteur géométrique, pas une consigne
Dire que les organes sont séparés par environ 137,5 degrés est une description utile, mais elle ne révèle pas à elle seule le mécanisme. Dans des systèmes itératifs où de nouveaux éléments sont ajoutés près d’un front en croissance et se repoussent à courte portée, plusieurs organisations rationnelles sont d’abord possibles. Quand la vitesse relative de croissance varie, les arrangements se réorganisent et peuvent converger vers une divergence voisine de l’angle d’or.
Douady et Couder ont reproduit des familles de Fibonacci dans une expérience physique et une simulation où des éléments successifs interagissaient localement. Leur résultat montre qu’un ordre phyllotactique peut émerger par auto-organisation. Il ne prouve pas que toutes les plantes emploient exactement le même mécanisme physique; il établit plutôt qu’aucune proportion mystique n’est nécessaire pour obtenir l’ordre observé. [3]
9. Du modèle de Vogel à une figure mesurable
Le modèle de Vogel place le n-ième point avec un angle = nα et un rayon . Le terme donne approximativement une aire constante par point, car l’aire d’un disque croît comme . Si α est proche de l’angle d’or, les points évitent longtemps les alignements radiaux simples et remplissent le disque de façon régulière. Ce modèle construit une géométrie, non un tissu vivant. [4]
Il sert néanmoins de laboratoire conceptuel: modifier légèrement α fait apparaître des rayons, des secteurs vides ou de nouvelles familles de parastichies. On peut donc séparer trois questions souvent confondues: comment distribuer des points sur un disque, comment un méristème choisit le prochain site, et comment la croissance ultérieure déforme le motif. Une ressemblance visuelle entre leurs résultats ne rend pas ces trois problèmes identiques.
10. Ce qu’il faut mesurer pour tester une explication
Une étude rigoureuse suit les primordia dans le temps plutôt que de compter seulement des spirales sur un organe mûr. Elle mesure l’angle de divergence, le plastochrone entre deux initiations, la taille du méristème, la position des transporteurs et les déplacements dus à la croissance. Des perturbations génétiques, chimiques ou mécaniques permettent ensuite de distinguer corrélation et causalité.
La phyllotaxie illustre donc une convergence de niveaux: une dynamique cellulaire locale produit une séquence d’initiations, cette séquence devient un réseau géométrique, et ce réseau fait apparaître des spirales comptables. Les équations de Fibonacci résument certaines régularités de ce réseau; elles ne remplacent ni la biologie du méristème ni l’histoire de croissance qui l’a construit.
11. Variations, exceptions et portée du modèle
Toutes les plantes ne présentent pas une phyllotaxie spiralée de Fibonacci. Des feuilles peuvent être opposées, verticillées ou distribuées selon des motifs irréguliers; un même individu peut changer de régime pendant son développement. Les dommages, mutations et changements de taille du méristème peuvent provoquer des transitions. Un modèle général doit donc expliquer à la fois la régularité fréquente, les alternatives stables et la possibilité de passer de l’une à l’autre.
Même lorsque des nombres de Fibonacci apparaissent, ils ne mesurent pas directement une molécule ou une force. Ils émergent du classement des voisinages dans un réseau produit par la croissance. La conclusion raisonnable est précise: certaines dynamiques locales rendent ces couples très probables et robustes. Elle est plus intéressante scientifiquement que l’affirmation absolue selon laquelle la nature « suit » une suite numérique universelle.
12. Synthèse
La spirale phyllotactique n’est donc ni un plan préalable ni un accident graphique. Elle est une lecture géométrique d’un développement séquentiel. Les hormones et leurs transporteurs organisent les sites d’initiation; la croissance déplace ces sites; les voisinages font apparaître les parastichies; certains régimes dynamiques favorisent des couples de Fibonacci. Chaque niveau possède ses mesures et ses incertitudes, mais leurs prédictions peuvent être raccordées.
6. Conclusion
La phyllotaxie illustre comment des règles locales simples — chaque nouvel organe évite ses voisins — produisent des motifs globaux complexes et mathématiquement précis. Le nombre d'or et Fibonacci n'en sont pas la cause : ils sont la conséquence inévitable de l'optimisation de l'espace dans un système à croissance continue.
Références
- [1]Reinhardt, Didier et al.. (2003). Regulation of Phyllotaxis by Polar Auxin Transport. Nature, 426, p. 255–260. DOI: 10.1038/nature02081. https://www.nature.com/articles/nature02081
- [2]Smith, Richard S. et al.. (2006). A Plausible Model of Phyllotaxis. Proceedings of the National Academy of Sciences, 103(5), p. 1301–1306. DOI: 10.1073/pnas.0510457103. https://pmc.ncbi.nlm.nih.gov/articles/PMC1345713/
- [3]Douady, Stéphane; Couder, Yves. (1992). Phyllotaxis as a Physical Self-Organized Growth Process. Physical Review Letters, 68(13), p. 2098–2101. DOI: 10.1103/PhysRevLett.68.2098. https://journals.aps.org/prl/abstract/10.1103/PhysRevLett.68.2098
- [4]Vogel, Helmut. (1979). A Better Way to Construct the Sunflower Head. Mathematical Biosciences, 44(3–4), p. 179–189. DOI: 10.1016/0025-5564(79)90080-4. https://doi.org/10.1016/0025-5564(79)90080-4