1. Introduction
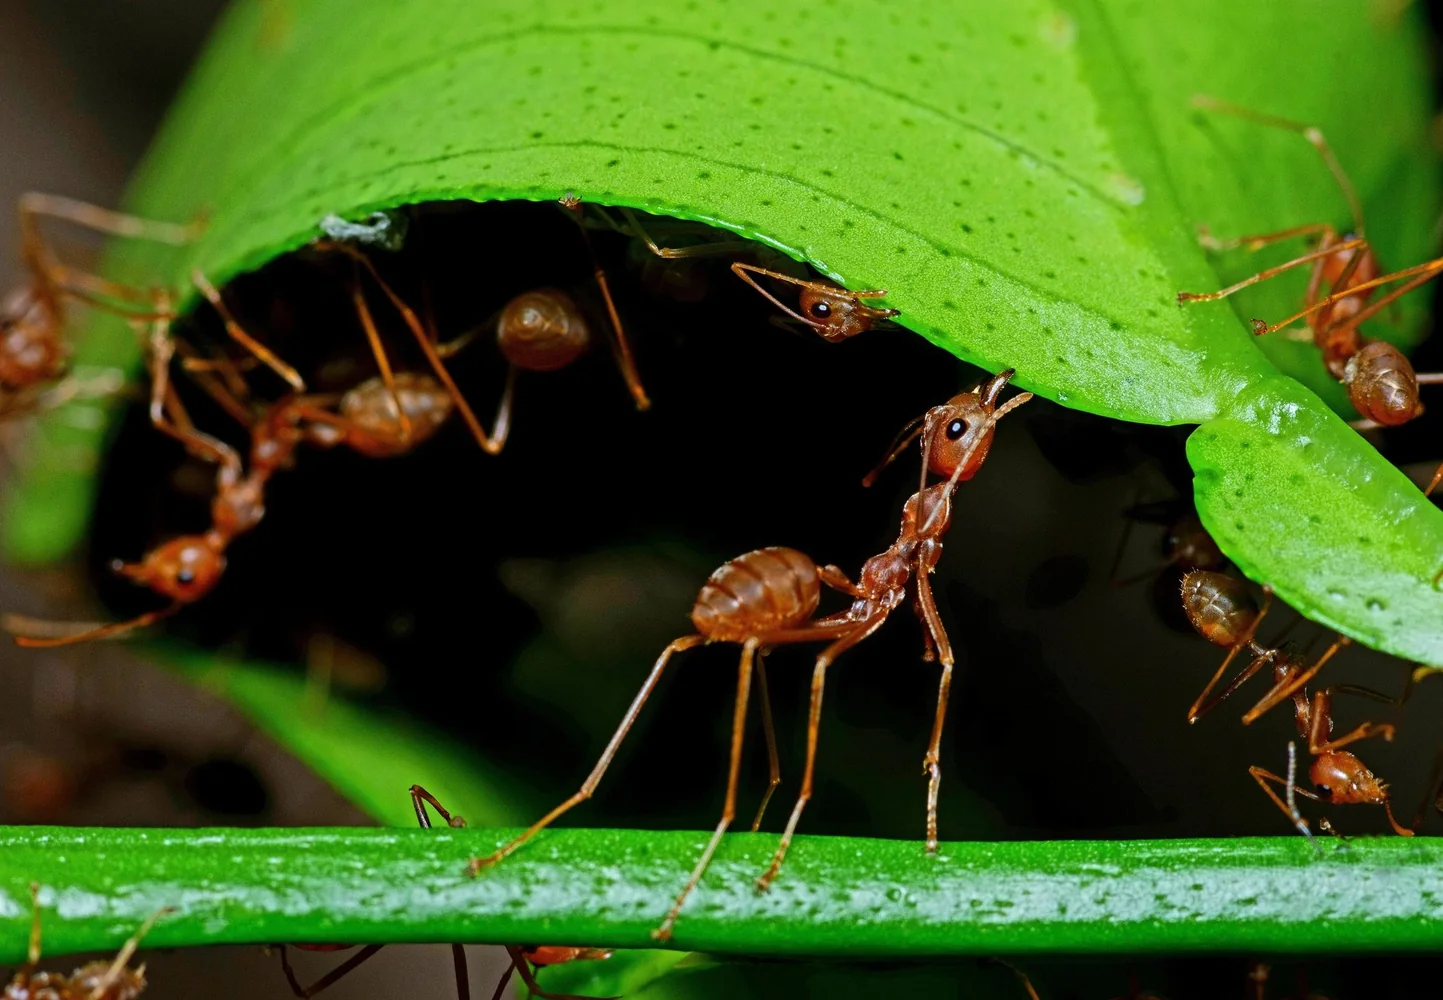
Une colonie de fourmis peut trouver le chemin le plus court entre son nid et une source de nourriture, répartir ses ouvrières entre différentes tâches selon les besoins, et construire des nids d'une complexité architecturale remarquable — le tout sans chef, sans plan global et sans communication directe entre individus. Ce paradoxe apparent entre la simplicité des individus et la sophistication du collectif est au cœur de la biologie des insectes sociaux et de la théorie des systèmes complexes.
La stigmergie est l'un des mécanismes qui expliquent cette coordination. Le terme désigne une forme de coordination indirecte dans laquelle les actions d'un agent modifient l'environnement, et ces modifications influencent les actions des agents suivants. L'environnement devient ainsi une mémoire externe partagée qui coordonne le comportement collectif sans nécessiter de communication directe ni de représentation globale.
2. Définition et histoire du concept
Le terme stigmergie a été introduit par le biologiste français Pierre-Paul Grassé en 1959 pour décrire la coordination de la construction chez les termites. Grassé observait que les termites ne semblaient pas suivre un plan préétabli, mais répondaient à l'état actuel de la construction. Un dépôt de matériau devenait un stimulus pour un dépôt voisin; la structure émergente guidait les actions suivantes. Grassé a forgé le terme à partir du grec <em>stigma</em> (marque, signe) et <em>ergon</em> (travail) : le travail guidé par les marques.
La définition de Grassé a été élargie et précisée par des chercheurs ultérieurs. Eric Bonabeau, Marco Dorigo et Guy Theraulaz ont distingué deux types de stigmergie : la stigmergie quantitative (la quantité d'une trace, comme la concentration de phéromones, guide le comportement) et la stigmergie qualitative (la nature ou la forme d'une trace guide le comportement). Cette distinction est importante car les mécanismes et les propriétés des deux types diffèrent.
La stigmergie est un cas particulier d'un phénomène plus général : la coordination médiée par l'environnement. Elle se distingue de la communication directe (un agent envoie un signal à un autre agent) et de la coordination par règles globales (tous les agents suivent le même algorithme sans interaction). Dans la stigmergie, la coordination émerge de l'interaction entre les agents et leur environnement commun.
3. Phéromones et optimisation de chemin

L'exemple le plus étudié de stigmergie quantitative est l'optimisation de chemin par les fourmis. Lorsqu'une fourmi explore son environnement, elle dépose une trace de phéromones sur son trajet. Si elle trouve de la nourriture et retourne au nid, elle renforce cette trace. D'autres fourmis, attirées par les phéromones, ont tendance à suivre les traces plus concentrées. Un chemin plus court est parcouru plus rapidement, ce qui permet à la fourmi de faire plus d'allers-retours par unité de temps et de déposer plus de phéromones. La rétroaction positive sélectionne progressivement le chemin le plus court.
Ce mécanisme a été démontré expérimentalement par Deneubourg et al. (1990) avec le « pont à deux branches » : des fourmis placées entre leur nid et une source de nourriture avec deux chemins de longueurs différentes choisissent progressivement le chemin le plus court. L'évaporation des phéromones est essentielle : sans elle, le système se bloquerait sur le premier chemin exploré, quelle que soit sa longueur. L'évaporation introduit une forme d'oubli qui maintient la capacité d'adaptation.
Il est important de noter que ce mécanisme ne produit pas toujours le chemin optimal au sens mathématique. Il produit une bonne solution dans des conditions normales, mais peut se bloquer sur un chemin sous-optimal si les conditions changent rapidement ou si la colonie est trop petite pour explorer suffisamment. La robustesse du mécanisme dépend du rapport entre le taux de dépôt de phéromones, le taux d'évaporation et la taille de la colonie.
4. Construction chez les termites : architecture sans architecte
Les termitières de certaines espèces africaines (notamment <em>Macrotermes bellicosus</em> et <em>Macrotermes michaelseni</em>) sont parmi les constructions les plus complexes du règne animal. Elles peuvent atteindre plusieurs mètres de hauteur, contenir des millions d'individus, et présenter des systèmes de ventilation sophistiqués qui maintiennent la température et le taux de CO₂ dans des plages étroites. Ces structures sont construites par des termites individuels qui ne peuvent pas percevoir la structure globale et ne suivent pas de plan central.
Le mécanisme proposé par Grassé et confirmé par des études ultérieures est un exemple de stigmergie qualitative. Un termite dépose une boulette de terre imprégnée de phéromones. Cette boulette attire d'autres termites qui déposent leurs boulettes à proximité. Un pilier commence à se former. Lorsque deux piliers voisins atteignent une certaine hauteur, les termites commencent à les incliner l'un vers l'autre, formant une arche. Ce comportement est déclenché par la forme de la structure existante, pas par une instruction centrale.
Des modèles computationnels de la construction des termitières (Theraulaz et Bonabeau, 1995; Turner, 2000) ont reproduit des structures ressemblant aux termitières réelles en utilisant des règles locales simples. Ces modèles montrent que la complexité architecturale peut émerger de règles simples appliquées localement, sans nécessiter de représentation globale. Ils montrent aussi que les structures produites dépendent fortement des paramètres des règles locales et des conditions environnementales (humidité, température, courants d'air).
La forme des termitières varie considérablement selon les espèces et les environnements. Certaines espèces construisent des tours cylindriques, d'autres des structures en champignon, d'autres encore des nids souterrains complexes. La spirale peut apparaître dans certaines architectures (galeries hélicoïdales, structures en colimaçon), mais elle n'est pas une propriété universelle des constructions stigmergiques. Chaque architecture est le résultat de règles locales spécifiques à l'espèce et aux conditions environnementales.
5. Stigmergie humaine et numérique
Le concept de stigmergie a été étendu aux systèmes humains et numériques. Dans ces contextes, les « traces » ne sont pas des phéromones mais des artefacts culturels, des documents, des données ou des états de systèmes informatiques. La coordination stigmergique humaine est omniprésente : un tableau blanc partagé, un dépôt de code (Git), une page Wikipédia, un fil de discussion en ligne — tous sont des environnements modifiés par les actions des participants qui guident les actions suivantes.
Wikipedia est un exemple particulièrement frappant. Des millions d'articles ont été créés et améliorés par des contributeurs qui ne se connaissent pas et ne se coordonnent pas directement. Chaque modification laisse une trace (l'article modifié, l'historique des révisions) qui guide les modifications suivantes. La qualité globale de l'encyclopédie émerge de ces interactions locales, sans éditeur central qui supervise chaque article.
La stigmergie numérique présente des propriétés différentes de la stigmergie biologique. Les traces numériques ne s'évaporent pas (sauf si elles sont explicitement supprimées), peuvent être copiées et distribuées instantanément, et peuvent être lues par des agents à distance. Ces différences modifient les dynamiques de coordination : la persistance des traces peut créer des effets de verrouillage (lock-in) plus forts que dans les systèmes biologiques; la distribution instantanée peut accélérer la convergence vers des solutions communes.
6. Algorithmes de colonies de fourmis
Les algorithmes de colonies de fourmis (Ant Colony Optimization, ACO) ont été développés par Marco Dorigo à partir de 1992 comme une famille de méthodes d'optimisation inspirées du comportement des fourmis. Dans ces algorithmes, des agents virtuels (fourmis artificielles) explorent un espace de solutions en déposant des traces virtuelles (phéromones numériques) sur les solutions qu'ils visitent. La qualité d'une solution détermine la quantité de phéromones déposées; l'évaporation maintient la diversité de l'exploration.
Les algorithmes ACO ont été appliqués avec succès à de nombreux problèmes d'optimisation combinatoire : le problème du voyageur de commerce, le routage dans les réseaux de télécommunication, l'ordonnancement de tâches, la conception de circuits électroniques. Ils sont particulièrement efficaces pour les problèmes où l'espace de solutions est grand et discret, et où des heuristiques locales peuvent guider l'exploration.
La convergence des algorithmes ACO est bien étudiée théoriquement. Sous certaines conditions (taux d'évaporation approprié, nombre suffisant d'agents), ils convergent vers des solutions proches de l'optimum. Mais comme pour les fourmis biologiques, cette convergence n'est pas garantie dans tous les cas, et les paramètres de l'algorithme doivent être ajustés selon le problème. La métaphore biologique est utile pour l'intuition, mais la rigueur mathématique requiert une analyse indépendante.
7. Limites du concept et lien avec la spirale
La stigmergie est un concept puissant mais qui a ses limites. Elle décrit un mécanisme de coordination, pas une propriété universelle de tous les systèmes collectifs. Tous les comportements collectifs ne sont pas stigmergiques : certains nécessitent une communication directe, d'autres reposent sur des règles génétiquement programmées sans interaction avec l'environnement. La stigmergie est une explication partielle qui doit être complétée par d'autres mécanismes pour rendre compte de la complexité des comportements collectifs observés.
Le lien entre stigmergie et spirale est indirect mais réel. La stigmergie est un mécanisme d'émergence : des structures complexes émergent d'interactions locales simples. La spirale peut être l'une de ces structures émergentes dans certains contextes (galeries hélicoïdales de termites, trajectoires spiralées de fourmis dans certaines conditions), mais elle n'est pas le résultat nécessaire de la stigmergie en général. La connexion avec le projet « La spirale est partout » se situe dans le mécanisme d'émergence lui-même : comment des règles locales simples peuvent produire des formes globales complexes, dont parfois des spirales.
Ce que la stigmergie illustre pour le projet est la convergence entre des domaines très différents (biologie des insectes, informatique, sciences sociales) vers un même mécanisme abstrait : la coordination par modification de l'environnement. Cette convergence n'est pas due à une loi physique commune ni à une origine évolutive partagée; elle reflète la généralité d'un principe organisationnel qui peut être redécouvert indépendamment dans des contextes très différents.
Le milieu devient une mémoire partagée
Dans une communication directe, un agent adresse un signal à un autre. Dans une coordination stigmergique, il modifie le milieu ; une autre action devient ensuite plus probable à cet endroit. La trace peut persister après le départ de son producteur. Le destinataire n’a donc pas besoin de rencontrer celui-ci ni de connaître son intention. Cette séparation entre l’action et sa conséquence ultérieure est le mécanisme à chercher, plutôt qu’une simple ressemblance entre un groupe et une « intelligence » centrale.
Les travaux de Deneubourg et de ses collègues sur l’exploration de la fourmi d’Argentine montrent comment des règles locales de dépôt et de suivi de traces peuvent produire une organisation collective. Le petit laboratoire suivant est une construction pédagogique inspirée de ce principe. Il ne reproduit ni leur dispositif expérimental ni une mesure de concentration de phéromone. Pour reconnaître le mécanisme dans un autre système, il faut identifier ce qui écrit la trace, ce qui la lit et ce qui l’efface. [1]
Construire un choix local entre deux chemins
À chaque pas, six agents choisissent entre deux branches. Leur probabilité dépend du carré de la trace augmentée d’un faible fond de 0,1 ; cela renforce la préférence pour une branche déjà marquée sans interdire l’exploration. Le chemin court rapporte une unité de trace après deux pas et le long après cinq. Les deux traces valent un au départ. Cette différence de délai permet à une branche de recevoir plus tôt ses premiers retours, puis de bénéficier d’un renforcement. Les choix restent aléatoires, avec une graine fixée pour rendre le calcul reproductible.
Le graphique montre les traces, pas les effectifs d’une colonie réelle. Les dépôts des agents déjà engagés arrivent après leur délai, puis influencent les choix suivants. Changer l’évaporation modifie l’équilibre entre accumulation et oubli. Même si un chemin devient dominant, aucun agent n’a comparé globalement toutes les routes. Il faut aussi éviter une conclusion excessive : ce modèle ne garantit pas de trouver un optimum général et peut conserver une préférence devenue peu utile.
L’évaporation règle la durée de la mémoire
Sans dépôt nouveau, une fraction ρ de la trace disparaît à chaque pas. Il reste donc (1−ρ)ᵗ après t pas. Avec ρ=0,08, un pas conserve 92 % de la trace ; répéter ce facteur produit une décroissance multiplicative, et non une diminution de huit unités. Les trois courbes partent de la même valeur pour isoler cet effet. Une mémoire très persistante stabilise une décision, mais conserve longtemps des informations anciennes ; un oubli rapide facilite l’adaptation tout en rendant l’information plus fragile.
Cette tension entre stabilité et réactivité apparaît dans de nombreux dispositifs de coordination, mais il faut vérifier le mécanisme de chaque analogie. Une page collaborative conserve des modifications selon des règles éditoriales ; elle ne s’évapore pas automatiquement comme une phéromone. Employer le mot stigmergie n’autorise donc pas à transférer les paramètres d’une fourmi à un système humain. Le schéma fournit une grille de questions sur la mémoire locale, pas une équation universelle de l’intelligence collective.
Fermer un chemin révèle le rôle de l’oubli
Dans la dernière expérience, la branche courte devient inaccessible au pas cinquante. Les nouveaux départs prennent alors obligatoirement la branche longue ; les dépôts déjà en attente sur la branche courte arrivent encore avant de s’éteindre. La probabilité affichée passe à zéro parce que l’accès est fermé, pas parce que les agents ont anticipé l’obstacle. La vieille trace peut rester élevée pendant plusieurs pas : conserver une information dans le milieu ne la rend pas automatiquement actuelle.
Ce test permet de distinguer une règle de choix, une contrainte d’accès et un mécanisme d’effacement. Pour juger l’adaptation d’un système réel, on mesurerait séparément le délai de détection, le temps de renouvellement des traces et la récupération des performances. Une piste courbe ou une marche en spirale n’est pas nécessaire à la stigmergie : le phénomène concerne une coordination médiée par le milieu. Inversement, un beau motif spiralé ne démontre pas, à lui seul, l’existence d’une mémoire collective. [1]
Références
- [1]Deneubourg, J.-L.; Aron, S.; Goss, S.; Pasteels, J. M.. (1990). The self-organizing exploratory pattern of the argentine ant. Journal of Insect Behavior. DOI: 10.1007/BF01417909. https://link.springer.com/article/10.1007/BF01417909 [consulté le 2026-10-19]