1. Introduction
Retirer un seul maillon d'une chaîne peut suffire à la briser. Dans un écosystème, retirer une espèce peut déclencher une cascade de changements qui traverse plusieurs niveaux et transforme des paysages entiers. Cette propagation n'est pas aléatoire : elle suit la structure du réseau trophique, c'est-à-dire l'ensemble des relations alimentaires qui relient les organismes d'un milieu.
L'écologie des réseaux trophiques est une discipline qui combine la biologie des populations, la théorie des graphes et la thermodynamique. Elle cherche à comprendre comment l'énergie et la matière circulent dans les écosystèmes, comment les perturbations se propagent, et quelles propriétés structurelles confèrent la stabilité ou la fragilité.
2. Structure d'un réseau trophique
Un réseau trophique est un graphe orienté. Les nœuds représentent des espèces ou des groupes fonctionnels (par exemple, « herbivores de taille moyenne »). Les arêtes orientées indiquent les relations de prédation : une flèche de A vers B signifie que A est consommé par B. La densité du réseau — le rapport entre le nombre de liens observés et le nombre de liens possibles — est une mesure de sa connectivité.
Les réseaux trophiques réels sont rarement de simples chaînes linéaires. La plupart des espèces ont plusieurs proies et plusieurs prédateurs. L'omnivorie — consommer à plusieurs niveaux trophiques — est courante. Les boucles de rétroaction existent : un prédateur peut consommer une proie qui consomme elle-même une proie du prédateur. Ces structures complexes rendent l'analyse difficile mais aussi plus réaliste.
La redondance fonctionnelle désigne la présence de plusieurs espèces remplissant un rôle écologique similaire. Un réseau avec une forte redondance est plus robuste à la perte d'une espèce : si l'une disparaît, les autres peuvent compenser. Un réseau sans redondance est vulnérable à l'extinction secondaire en cascade.
3. Flux d'énergie et niveaux trophiques
L'énergie entre dans un écosystème principalement par la photosynthèse. Les producteurs primaires — plantes, algues, cyanobactéries — convertissent l'énergie solaire en biomasse. Les consommateurs primaires (herbivores) se nourrissent des producteurs. Les consommateurs secondaires se nourrissent des herbivores, et ainsi de suite. Les décomposeurs — bactéries et champignons — recyclent la matière organique morte.
À chaque transfert trophique, une grande partie de l'énergie est dissipée sous forme de chaleur par la respiration. L'efficacité de transfert trophique est typiquement de l'ordre de 10 % : pour produire 1 kg de prédateur, il faut environ 10 kg de proie, qui ont nécessité 100 kg de végétaux. Cette règle des 10 % est une approximation grossière — les valeurs réelles varient entre 5 et 20 % selon les systèmes — mais elle explique pourquoi les chaînes alimentaires sont rarement plus longues que quatre ou cinq niveaux.
La pyramide trophique représente la biomasse ou l'énergie à chaque niveau. Elle est généralement plus large à la base (producteurs) et plus étroite au sommet (prédateurs apicaux). Des inversions sont possibles dans certains systèmes aquatiques où le phytoplancton se renouvelle très rapidement malgré une faible biomasse instantanée.
4. Espèces clés de voûte et cascades trophiques
Le concept d'espèce clé de voûte a été introduit par Robert Paine en 1969 à partir d'expériences sur les côtes rocheuses du Pacifique. En retirant l'étoile de mer Pisaster ochraceus, Paine a observé que les moules — sa proie principale — ont envahi l'espace et éliminé la plupart des autres espèces. L'étoile de mer, bien que peu abondante, maintenait la diversité de la communauté. Son influence était disproportionnée par rapport à sa biomasse.
Une cascade trophique se produit lorsque la modification d'un niveau trophique se propage vers le bas (cascade descendante, ou top-down) ou vers le haut (cascade ascendante, ou bottom-up). Dans une cascade descendante, la réduction d'un prédateur libère ses proies, qui peuvent alors surexploiter leurs propres ressources. Dans une cascade ascendante, la réduction des producteurs primaires se propage vers les niveaux supérieurs.
Les cascades trophiques ont été documentées dans de nombreux systèmes : lacs, océans, forêts tropicales, savanes. Leur intensité varie considérablement. Dans certains systèmes, les effets sont forts et bien documentés; dans d'autres, ils sont faibles ou masqués par d'autres facteurs. La généralisation est risquée.
5. Yellowstone : un cas nuancé
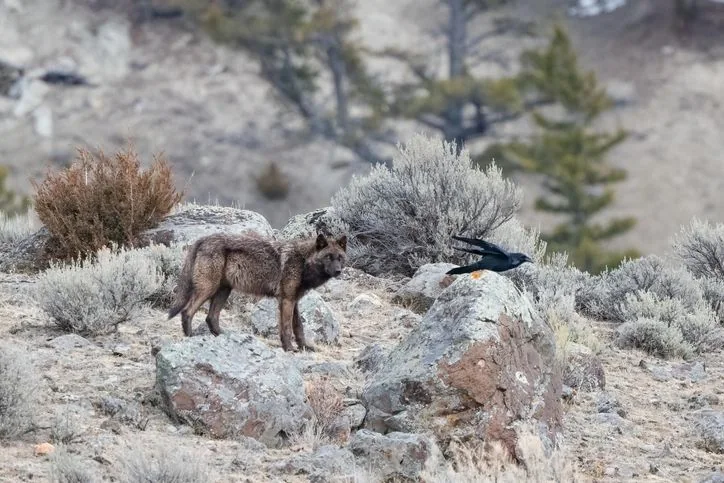
La réintroduction des loups gris dans le parc national de Yellowstone en 1995-1996 est l'un des exemples les plus cités de cascade trophique. La version simplifiée de l'histoire est la suivante : les loups ont réduit les populations d'élans, qui broutaient excessivement les saules et les peupliers dans les vallées fluviales; la végétation s'est rétablie, ce qui a stabilisé les berges, modifié les cours d'eau et favorisé les castors, les oiseaux et d'autres espèces. Certains auteurs ont même parlé de « rivières de la peur » pour décrire comment la simple présence des loups aurait modifié le comportement spatial des élans.
La réalité est plus complexe. Des études ultérieures ont montré que les effets des loups sur la végétation sont variables selon les zones du parc, les conditions climatiques et la présence d'autres facteurs comme la sécheresse, les incendies et la pression humaine. Ripple et Beschta (2012) ont documenté des effets positifs sur la végétation riveraine, mais d'autres chercheurs ont souligné que la récupération de la végétation avait commencé avant la réintroduction des loups dans certaines zones, et que les effets comportementaux des loups sur les élans sont difficiles à isoler des effets numériques.
Yellowstone illustre à la fois la réalité des cascades trophiques et les difficultés d'interprétation dans les systèmes naturels complexes. Un seul facteur — la réintroduction des loups — ne peut pas expliquer l'ensemble des changements observés. Les mécanismes sont multiples, interactifs et dépendants du contexte. C'est précisément ce que la théorie des réseaux trophiques prédit : les effets se propagent, mais leur amplitude dépend de la structure du réseau et des conditions locales.
**Débat scientifique.** La controverse sur Yellowstone reflète un débat plus large sur la force relative des contrôles top-down (prédateurs) et bottom-up (ressources) dans les écosystèmes. Hairston, Smith et Slobodkin (1960) ont proposé que les herbivores sont généralement contrôlés par les prédateurs (monde vert). Oksanen et al. (1981) ont montré que la réponse dépend de la productivité du système. Ce débat n'est pas résolu et varie selon les écosystèmes.
6. Stabilité, résilience et robustesse
La stabilité d'un réseau trophique peut être définie de plusieurs façons. La stabilité locale désigne le retour à l'équilibre après une petite perturbation. La résilience désigne la vitesse de ce retour. La robustesse désigne la capacité du réseau à maintenir sa structure et ses fonctions après la perte d'une ou plusieurs espèces. Ces trois propriétés ne sont pas équivalentes et peuvent même être en tension.
Robert May a montré en 1972, dans un article fondateur, que des réseaux aléatoires de grande taille et forte connectivité tendent à être instables. Ce résultat, contre-intuitif par rapport à l'idée populaire que la diversité favorise la stabilité, a déclenché un débat qui dure encore. Des travaux ultérieurs ont montré que la structure non aléatoire des réseaux réels — avec des liens forts peu nombreux et des liens faibles nombreux — peut réconcilier complexité et stabilité.
L'extinction secondaire se produit lorsque la disparition d'une espèce entraîne la disparition d'autres espèces qui en dépendaient. Dans un réseau très connecté, une extinction peut se propager en cascade. La vulnérabilité d'un réseau à ce phénomène dépend de sa topologie : les réseaux avec des nœuds très connectés (hubs) sont vulnérables à la perte de ces nœuds, mais robustes aux extinctions aléatoires.
7. Modélisation : Lotka-Volterra généralisé
Le modèle de Lotka-Volterra décrit les interactions entre deux espèces — un prédateur et une proie — par deux équations différentielles couplées. La proie croît exponentiellement en l'absence de prédateur et est consommée à un taux proportionnel au produit des deux populations. Le prédateur croît grâce à la consommation de proies et décroît par mortalité naturelle. Ce modèle produit des oscillations cycliques dans le plan de phase.
Le modèle généralisé étend cette approche à n espèces. Pour chaque espèce i, la dynamique est , où est le taux de croissance intrinsèque et αᵢⱼ est le coefficient d'interaction entre les espèces i et j. La matrice A = (αᵢⱼ) encode toute la structure du réseau. La stabilité de l'équilibre dépend des valeurs propres de la matrice jacobienne évaluée à cet équilibre.
**Limites du modèle.** Les coefficients αᵢⱼ sont extrêmement difficiles à mesurer sur le terrain. Ils varient avec la densité des populations, les conditions environnementales et la phénologie. Les modèles de Lotka-Volterra supposent des interactions linéaires et des populations bien mélangées, ce qui est rarement le cas dans la nature. Des modèles plus réalistes incluent des réponses fonctionnelles non linéaires (Holling type II et III), des effets de groupe et des structures spatiales.
Les approches basées sur les flux d'énergie offrent une alternative. Plutôt que de modéliser les abondances, elles suivent les flux de carbone ou d'azote entre compartiments. Ces modèles sont plus faciles à paramétrer à partir de données biogéochimiques, mais ils perdent l'information sur les dynamiques de population individuelles.
8. Perturbations humaines
La surpêche est l'une des perturbations trophiques les plus documentées. Le retrait des grands prédateurs marins — requins, thons, morues — libère leurs proies et peut déclencher des cascades qui modifient la structure des communautés marines. Dans plusieurs régions, la surpêche des prédateurs apicaux a conduit à une prolifération de méduses et d'oursins, et à l'effondrement des herbiers marins.
Les espèces envahissantes introduisent de nouveaux liens dans le réseau. Elles peuvent être des prédateurs sans ennemis naturels, des compétiteurs supérieurs ou des vecteurs de maladies. La truite arc-en-ciel introduite dans des lacs de montagne sans poissons a éliminé les amphibiens et les invertébrés aquatiques dont elle se nourrissait, modifiant profondément la structure des communautés lacustres.
Le changement climatique modifie les réseaux trophiques de plusieurs façons : déplacement des aires de répartition, désynchronisation phénologique (les proies et les prédateurs ne sont plus au même endroit au même moment), modification des taux de croissance et de métabolisme. Ces changements peuvent rompre des interactions coévoluées et créer de nouvelles vulnérabilités.
9. Limites et débats
La construction d'un réseau trophique complet est une entreprise difficile. Les interactions sont nombreuses, souvent rares, saisonnières ou dépendantes de la taille des individus. Les données de terrain sont coûteuses à collecter et souvent incomplètes. Les réseaux publiés sont des approximations qui agrègent des espèces en groupes fonctionnels et ignorent de nombreuses interactions faibles.
Le débat entre complexité et stabilité reste ouvert. Les travaux de May (1972) suggèrent que la complexité déstabilise; des études empiriques et des modèles plus réalistes suggèrent que la structure non aléatoire des réseaux réels peut compenser cet effet. La réponse dépend probablement du type de complexité (diversité, connectivité, force des liens) et du type de perturbation.
La propagation d'une perturbation dans un réseau trophique n'est pas une spirale au sens géométrique. C'est une diffusion dans un graphe, avec des effets directs et indirects, des amplifications et des atténuations selon la structure du réseau. La métaphore de la spirale peut illustrer l'idée que les effets s'amplifient ou se propagent en cercles concentriques, mais elle ne doit pas être confondue avec un mécanisme précis.
Commencer par définir le sens des flèches
Une flèche entre deux espèces peut signifier « mange », « est mangé par » ou « modifie l’abondance de ». Ces conventions ne sont pas interchangeables. Dans notre premier croquis, la flèche suit la biomasse de la ressource vers le consommateur : végétaux → herbivores → prédateurs. Le réseau indique qui peut fournir de la matière et de l’énergie à qui. Il ne donne pas la quantité transférée, et encore moins le rendement de chaque transfert. Les trois cases représentent des groupes fonctionnels dans un exemple abstrait, sans prétendre décrire un site mesuré.
Un réseau réel possède davantage de niveaux, de voies détritiques et d’espèces omnivores. La liste des liens dépend aussi du stade de vie : un organisme peut changer de régime au cours de son développement. La carte est donc une hypothèse documentée sur des interactions à une échelle et à une période données. L’expérience classique de Paine montre pourquoi une description des relations doit être reliée à des observations et à des perturbations du système pour comprendre la diversité, au-delà du seul comptage des espèces. [1]
Un réseau d’effets répond à une autre question
Dans le deuxième croquis, les flèches décrivent maintenant un effet local sur la croissance d’un autre compartiment. Davantage de prédateurs tend, toutes choses égales par ailleurs, à augmenter la mortalité des herbivores : signe négatif. Davantage d’herbivores peut fournir davantage de ressources aux prédateurs : signe positif. La même relation alimentaire devient donc deux effets de signes opposés. Une flèche positive ne signifie pas un bénéfice pour tout l’écosystème ; elle décrit seulement le sens d’une réponse locale.
La matrice J résume ces dérivées près d’un état donné. Leurs signes ne fixent ni leur amplitude ni la stabilité du système : deux réseaux ayant les mêmes signes peuvent réagir différemment si les intensités, les temps de réponse ou les autorégulations diffèrent. Une augmentation temporaire d’une population n’est pas non plus équivalente à la suppression durable d’une espèce. Pour interpréter un résultat, on doit préciser la perturbation et la variable observée, puis distinguer réponse immédiate et nouvel équilibre.
Décomposer une cascade en deux effets
Sur un seul chemin prédateurs → herbivores → végétaux, les deux signes négatifs se multiplient : une augmentation des prédateurs peut réduire l’herbivorie et favoriser les végétaux. On appelle cet effet positif indirect : il passe par un compartiment intermédiaire. Le mot « peut » est essentiel, car le produit des signes donne une direction attendue pour ce chemin isolé, pas une mesure du bilan du réseau complet. La flèche verte courbe synthétise ce raisonnement ; elle ne représente pas une espèce mangeant directement une plante.
L’étude de Paine porte sur un système intertidal et une manipulation d’un prédateur, avec des changements de composition de la communauté. Elle ne doit pas être remplacée par un dessin de trois niveaux supposé universel. Pour tester une cascade ailleurs, il faut des témoins, une durée d’observation adaptée, une mesure de l’herbivorie ou des interactions pertinentes et une prise en compte des autres différences entre sites. Les croquis aident à formuler les chemins à vérifier ; les données décident ensuite de leur importance. [1]
Omnivorie, délais et boucles : pourquoi le bilan peut changer
Ajoutons une consommation directe des végétaux par le compartiment supérieur. Deux chemins relient maintenant ce compartiment aux plantes : le chemin indirect précédent est positif, le chemin direct est négatif. Leurs signes seuls ne disent pas lequel domine. Il faudrait estimer les intensités et la façon dont elles changent avec les abondances. La complexité du réseau ne garantit donc ni stabilité ni instabilité ; elle multiplie surtout les mécanismes possibles qu’un modèle doit rendre explicites.
Une spirale, lorsqu’elle apparaît dans un portrait de phase écologique, décrit une évolution conjointe d’abondances, par exemple proies et prédateurs. Elle n’est pas contenue dans la forme du graphe alimentaire. Selon les équations et les paramètres, on peut obtenir une convergence sans oscillation, des oscillations amorties, un cycle limite ou d’autres comportements. Avant de parler de spirale, il faut donc choisir des axes mesurables, suivre les états dans le temps et vérifier le modèle dynamique : dessiner une boucle dans un réseau n’est pas encore observer une rotation dans l’espace des états.
Références
- [1]Paine, Robert T.. (1966). Food Web Complexity and Species Diversity. The American Naturalist. DOI: 10.1086/282400. https://www.journals.uchicago.edu/doi/10.1086/282400 [consulté le 2026-10-19]